


QUANG HỢP - ĐỈNH CAO CỦA TỰ DƯỠNG (PHOTOSYNTHESIS)

CHƯƠNG 2: QUANG HỢP - ĐỈNH CAO CỦA TỰ DƯỠNG (PHOTOSYNTHESIS)
Quang hợp là quá trình sinh học quan trọng nhất trên Trái Đất, biến năng lượng ánh sáng mặt trời thành năng lượng hóa học trong các liên kết đường.
6CO2+6H2OAˊnh saˊngC6H12O6+6O2
BẮT ÁNH SÁNG (LIGHT HARVESTING)
1. Hình thái lá (Leaf form)


Lá được thiết kế mỏng và rộng để tối đa hóa diện tích tiếp xúc với ánh sáng và giảm khoảng cách khuếch tán của CO2.
Lớp cutin phủ ngoài giúp ngăn mất nước.
Khí khổng tập trung chủ yếu ở mặt dưới lá để điều hòa sự trao đổi khí và thoát hơi nước.


2. Diệp lục và Lục lạp (Chlorophyll and the chloroplast)
Sắc tố chính là Diệp lục a (Chlorophyll a) và Diệp lục b (Chlorophyll b), hấp thụ mạnh ánh sáng đỏ và xanh lam, phản xạ ánh sáng xanh lá cây.
Các sắc tố phụ (Carotenoid) giúp hấp thụ các dải sóng khác và bảo vệ diệp lục khỏi bị tổn thương do ánh sáng quá mạnh (quang phân hủy).


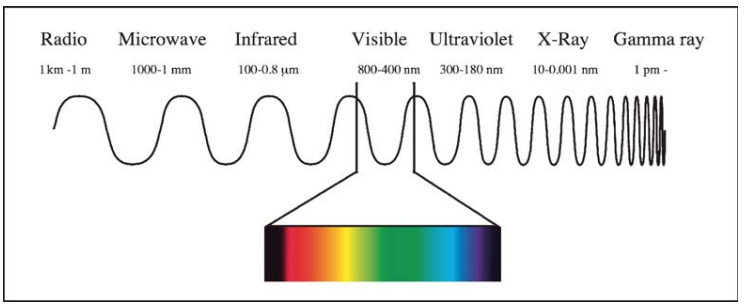
CHUYỂN HÓA NĂNG LƯỢNG ÁNH SÁNG THÀNH NĂNG LƯỢNG HÓA HỌC

Quang hợp chia làm 2 pha: Pha sáng (xảy ra ở màng thylakoid) và Pha tối / Chu trình Calvin (xảy ra ở chất nền stroma).


Quá trình truyền electron không vòng (Non-cyclic electron flow):
Hệ quang hóa II (Photosystem II - PSII):
Hấp thụ bước sóng ánh sáng 680 nm (P680).
Phức hợp quang phân hủy nước chẻ nước thành O2, H+ và electron:
2H2O→O2+4H++4e−

Năng lượng ánh sáng kích thích electron nhảy lên mức năng lượng cao và truyền qua chuỗi truyền electron, bơm H+ vào lòng thylakoid tạo chênh lệch nồng độ để tổng hợp ATP (nhờ enzyme ATP Synthase).

Hệ quang hóa I (Photosystem I - PSI):
Hấp thụ bước sóng 700 nm (P700).
Electron từ PSII chuyển đến PSI tiếp tục được ánh sáng kích thích để truyền đến NADP+ reductase, tạo ra NADPH.
Truyền electron vòng (Cyclic electron flow):
Electron từ PSI quay trở lại chuỗi truyền electron thay vì tạo NADPH, mục đích là sản xuất thêm ATP để cung cấp cho Chu trình Calvin.
CHU TRÌNH CALVIN (THE CALVIN CYCLE / C3 PATHWAY)
Chu trình Calvin diễn ra trong stroma của lục lạp, sử dụng ATP và NADPH từ pha sáng để cố định CO2 thành đường.


Chu trình gồm 3 giai đoạn chính:
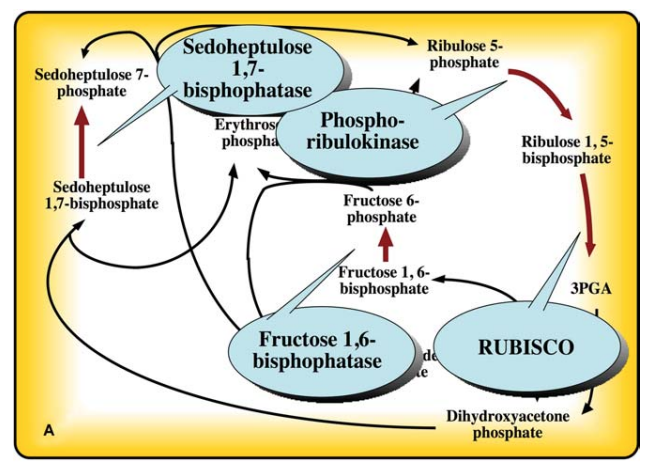
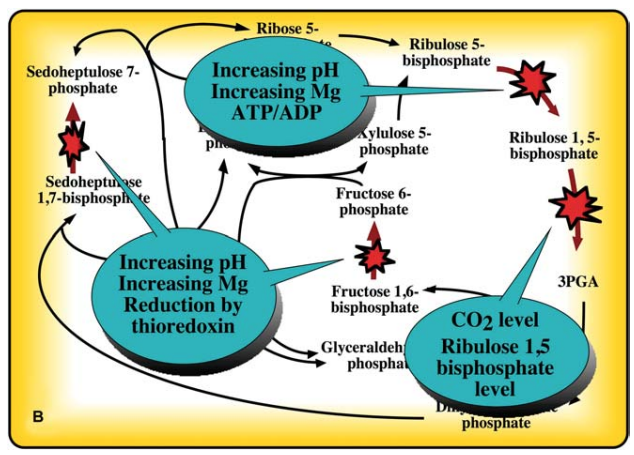

Cố định CO2 (Carboxylation):
Khí CO2 kết hợp với đường 5-carbon RuBP (Ribulose-1,5-bisphosphate) nhờ enzyme RUBISCO.
Tạo ra hợp chất 6-carbon không bền, lập tức phân giải thành 2 phân tử 3-carbon: 3-PGA (3-phosphoglycerate).
Khử (Reduction):
3-PGA nhận phosphate từ ATP và electron từ NADPH để chuyển thành G3P (Glyceraldehyde-3-phosphate / Triose phosphate).
G3P là nguyên liệu ban đầu để tổng hợp Glucose, Sucrose và Tinh bột.
Tái sinh chất nhận RuBP (Regeneration):
Phần lớn phân tử G3P được tái sử dụng qua nhiều phản ứng phức tạp (tiêu tốn thêm ATP) để tái sinh lại RuBP, duy trì chu trình.
ENZYME ĐẶC BIỆT: RUBISCO VÀ HÔ HẤP SÁNG (PHOTORESPIRATION)
Vai trò và Hạn chế của RUBISCO
RUBISCO (Ribulose-1,5-bisphosphate carboxylase-oxygenase) là enzyme phổ biến nhất trên Trái Đất.
Tuy nhiên, RUBISCO có hiệu suất hoạt động khá chậm và không hoàn hảo: nó có khả năng gắn cả CO2 lẫn O2.
Hô hấp sáng (Photorespiration):
Khi nhiệt độ cao hoặc thời tiết khô hạn, khí khổng đóng lại làm nồng độ CO2 trong lá giảm và O2 tăng lên.
RUBISCO sẽ gắn O2 thay vì CO2 vào RuBP (hoạt tính Oxygenase).
Quá trình này tạo ra 2-phosphoglycolate (chất độc hại) và cây phải tốn rất nhiều năng lượng (qua sự hợp tác của Lục lạp, Peroxisome và Ti thể) để tái chế nó thành 3-PGA, làm thất thoát đến 25% lượng carbon đã cố định và lãng phí ATP/NADPH.
TỔNG HỢP VÀ TÍCH TRỮ CARBOHYDRATE
Carbon cố định từ chu trình Calvin sẽ chuyển hóa thành hai dạng chính:
Sucrose (Đường mạn/mía): Đường đôi hòa tan, được tổng hợp ở tế bào chất và vận chuyển đi khắp các cơ quan của cây qua mạch rây (phloem).
Tinh bột (Starch): Polymer không hòa tan, được tổng hợp và tích trữ ngay trong lục lạp (ban ngày) hoặc trong amyloplast ở các cơ quan dự trữ như củ, hạt, quả (dài hạn).
TRANG 31 - 35
GIẢI PHÁP CHO VẤN ĐỀ CỦA HÔ HẤP SÁNG & CÁC CON ĐƯỜNG QUANG HỢP KHÁC

Để vượt qua tổn thất năng lượng do hô hấp sáng gây ra, một số nhóm thực vật đã tiến hóa các cơ chế tập trung $CO_2$ xung quanh enzyme RUBISCO:

1. Quang hợp $C_4$
Cấu trúc Anatomical (Giải phẫu Kranz / Hình vòng cung): Tế bào mô dậu phân bố quanh tế bào bao bao mạch.

Cơ chế:
$CO_2$ lần đầu tiên được cố định ở tế bào mô dậu nhờ enzyme PEP carboxylase (enzyme này không gắn với $O_2$) tạo thành hợp chất 4-carbon (Axit Oxaloacetic / Malate).
Malate được vận chuyển vào tế bào bao bao mạch, tại đây nó bị giải phóng $CO_2$.
Nồng độ $CO_2$ trong tế bào bao bao mạch tăng cao gấp nhiều lần, giúp RUBISCO hoạt động gần như hoàn hảo với hoạt tính carboxylase và loại bỏ hô hấp sáng.
2. Quang hợp CAM (Crassulacean Acid Metabolism)
Thường gặp ở các loài cây mọng nước sống ở vùng khô hạn (xương rồng, dứa, dứa dại).
Phân chia theo thời gian (Day/Night):
Ban đêm: Khí khổng mở ra để hấp thụ $CO_2$, cố định nhờ PEP carboxylase thành axit malic và tích trữ trong không bào lớn.
Ban ngày: Khí khổng đóng lại hoàn toàn để chống mất nước. Axit malic phân giải giải phóng $CO_2$ trực tiếp cho Chu trình Calvin trong lục lạp.

TỔNG HỢP VÀ TÍCH TRỮ CARBOHYDRATE
Sucrose: Là dạng đường đôi vận chuyển chính trong cây. Được tổng hợp ở tế bào chất từ các triose phosphate vận chuyển từ lục lạp ra.
Tinh bột (Starch): Được tổng hợp ngay trong lục lạp (ban ngày) hoặc trong các lạp thể tích trữ (Amyloplast) dưới hai dạng chính: Amylose (chuỗi thẳng) và Amylopectin (chuỗi phân nhánh).


TÍNH HIỆU QUẢ CỦA QUANG HỢP VÀ NĂNG LƯỢNG
Hiệu suất lý thuyết: Năng lượng ánh sáng được chuyển hóa thành năng lượng hóa học có hiệu suất lý thuyết cực đại khoảng 11 - 12%.
Hiệu suất thực tế: Trong tự nhiên, phần lớn thực vật $C_3$ chỉ đạt hiệu suất từ 1 - 2% do bị giới hạn bởi:
Ánh sáng phản xạ hoặc không đúng bước sóng hấp thụ.
Sự giới hạn về nồng độ $CO_2$ trong không khí.
Tổn thất năng lượng do hô hấp sáng ($C_3$) hoặc chi phí ATP bổ sung cho cơ chế tập trung $CO_2$ ($C_4$/CAM).


CHƯƠNG 3: TRAO ĐỔI CHẤT KHÔNG QUANG HỢP VÀ VẬN CHUYỂN TRONG MẠCH RÂY (PHLOEM TRANSPORT)
Chương này tập trung vào cách thức các sản phẩm quang hợp (carbohydrate) được vận chuyển từ nơi sản xuất (Cơ quan nguồn - Source) đến nơi sử dụng hoặc tích trữ (Cơ quan tiêu thụ/dự trữ - Sink).

MẠCH RÂY VÀ CẤU TRÚC HỆ THỐNG MẠCH RÂY (STRUCTURE OF THE PHLOEM)

Hệ thống mạch rây là mô dẫn sống vận chuyển các chất hữu cơ hòa tan trong cây.
Thành phần cấu tạo chính:
Tế bào ống rây (Sieve tube elements): Tế bào dài nối tiếp nhau thành ống. Khi trưởng thành, chúng mất đi nhân, không bào lớn, và nhiều bào quan để giảm trở lực cho dòng chảy. Đáy tế bào chứa các tấm rây (sieve plates) với nhiều lỗ rây.
Tế bào kèm (Companion cells): Tế bào nằm cạnh tế bào ống rây, duy trì đầy đủ nhân và ti thể. Tế bào kèm chịu trách nhiệm duy trì hoạt động sống và cung cấp năng lượng/protein cho tế bào ống rây thông qua hệ thống cầu sinh chất dày đặc.

NẠP SẢN PHẨM QUANG HỢP VÀO MẠCH RÂY (PHLOEM LOADING)
Quá trình đưa Sucrose từ tế bào quang hợp ở lá vào trong các ống rây của mạch rây:
Nạp qua con đường Symplast (Symplastic loading):
Sucrose di chuyển qua cầu sinh chất từ tế bào nhu mô lá sang tế bào kèm và vào ống rây. Thường gặp ở các loài cây gỗ.
Nạp qua con đường Apoplast (Apoplastic loading):
Sucrose được tiết ra thành tế bào (Apoplast), sau đó được chủ động vận chuyển ngược nồng độ vào trong tế bào kèm nhờ bơm Proton-Sucrose Symporter (sử dụng năng lượng ATP).

GIẢI NẠP KHỎI MẠCH RÂY (PHLOEM UNLOADING)
Khi dòng mạch rây đi tới cơ quan chứa/tiêu thụ (rễ, quả, củ, chồi non):
Sucrose thoát ra khỏi ống rây qua con đường Symplast hoặc Apoplast.
Tại đây, Sucrose được chuyển hóa thành Glucose/Fructose nhờ enzyme Invertase, hoặc biến đổi thành Tinh bột nhờ Sucrose Synthase để tích trữ.


ỨNG PHÓ VỚI TỔN THƯƠNG MẠCH RÂY (COPING WITH DAMAGE TO THE PHLOEM)


Mạch rây chứa dịch đường giàu dinh dưỡng dưới áp suất cao, rất dễ bị rò rỉ khi mô cây bị thương hoặc côn trùng tấn công (như rệp):
Cơ chế bịt kín tức thì: Sự lắng đọng của P-protein (Phloem protein) ngưng tụ tại lỗ rây để bịt lỗ rây bị rò rỉ.
Cơ chế lâu dài: Sự tổng hợp Callose (một polymer glucan) kết tủa và bịt bịt kín hoàn toàn các lỗ rây ở khu vực tổn thương để ngăn chặn mất chất dinh dưỡng và sự xâm nhập của vi sinh vật.


Nội dung và toàn bộ hình ảnh được dịch từ cuốn giáo trình Physiology and Behaviour of Plants


Bình luận